NATIONAL INDUSTRY ALLIANCE FOR MARINE DRUGS AND BIOPRODUCTS
2026年8月,来自Massachusetts Institute of Technology的Andreas Sichert等人在Nature上发表了一篇题为Synergistic degradation of fucoidans in the ocean的研究性论文。
Abstract
岩藻多糖是由褐藻和硅藻产生的一类复杂的多糖,由于其对微生物降解的抵抗力,有助于长期固碳。虽然单个微生物可以分解这些多糖的一部分,但目前还不清楚自然界中是否可能完全分解,如果是的话,通过什么机制。在这里,研究人员表明岩藻多糖是通过具有互补代谢功能的专门化细菌之间的协同作用而降解的。利用一个重建的海洋联合体的代谢组学分析,发现了细菌的代谢公会,它们优先降解稀有单体的硫酸岩藻糖主干或侧枝。这种功能分工导致不同降解剂之间的协同作用数量出人意料地高,将降解率提高到97.1%。尽管不同类型藻类的岩藻多糖结构不同,但降解物的代谢功能仍然保守,能够根据群落和底物组成对降解结果进行定量预测。在海洋后基因组中经常出现功能互补的岩藻多糖降解物,这表明协同降解是一种全球相关的战略。本文的发现表明,复杂生物聚合物的环境周转不仅取决于降解者的个体代谢能力,还取决于底物结构塑造的生态相互作用。这项工作为理解海洋中的碳循环和工程合成微生物联合体降解顽固性多糖提供了一个机制框架。

01
简介
植物和藻类多糖是地球上最丰富和最多样化的生物聚合物之一。微生物群落对它们的降解推动碳循环,促进肠道健康,并使可持续生物技术成为可能。作为植物和藻类保护性细胞外基质的主要成分,多糖的化学多样性升级了一场共同进化的军备竞赛,推动了碳水化合物活性酶的多样化及其通过水平基因转移在微生物降解者之间的重新洗牌。尽管这些分布的代谢能力在许多微生物生态系统中都很明显,但尚不清楚多个降解物如何共存于单一的复杂多糖资源上,并参与协同作用而不是竞争。因此,我们缺乏一个量化的、机械的框架,将个体降解者的新陈代谢和相互作用与群落一级的降解者联系起来。这一差距阻碍了我们对微生物在碳循环中的贡献的理解,也阻碍了我们设计微生物联合体以有效降解不同底物的能力。
在海洋生态系统中,褐藻和硅藻产生顽固的岩藻多糖,使它们在固碳中发挥关键作用。它们占海洋初级生产量的五分之一,通过下沉生物量和颗粒,将5GTC yr−1输出到海洋深处,那里的碳可以储存数千年。这些自然过程越来越多地被利用在褐藻水产养殖中,预计到2050年,褐藻水产养殖将占为基于自然的气候解决方案设定的1GTCO2yr−1固定目标的至少0.5%。岩藻多糖是藻类碳输出的主要物质,因为它占细胞壁和粘液的25%-50%,促进颗粒形成,并在长达几个月的时间内阻止微生物降解。这种稳定性可能归因于其复杂的结构,包括硫化岩藻糖骨架,该骨架在连接模式和硫化作用方面因藻类而异,以及非岩藻糖侧链的异质组成和连接结构。由于这种复杂性,只有少数几种细菌已知能降解岩藻多糖,而那些能降解岩藻多糖的细菌尽管编码了数十种岩藻多糖活性酶,但通常只能实现不完全降解。后基因组学研究揭示了具有互补酶系的共生降解物可能针对多糖的不同区域,这表明完全降解可能取决于专门微生物之间的正向相互作用--这是一种生态障碍,可以在海洋等稀薄环境中稳定岩藻多糖,并有助于解释为什么许多藻类依赖这种多糖作为保护层。

02
结果与讨论
1. 降解菌中的酶专化
为了了解微生物相互作用在岩藻多糖降解中的作用,研究人员以普通岩藻多糖为唯一碳源,从沿海海水中丰富了细菌群落。这种岩藻多糖(图1a)以前的特征结构可以概念化为两个在组成和结构上不同的资源库:一个由α-(1→3)或α-(1→4)连接的主链与短的α-(1→4)连接的岩藻糖主链组成的硫酸岩藻糖主链,以及由木糖、半乳糖、甘露糖和葡萄糖醛酸组成的侧链。经过12个连续的生长-稀释循环,浓缩实现了90%的衬底降解。宏基因组分析恢复了73个宏基因组组装基因组(MAG),其中微生物群-一个以复杂多糖降解者而闻名的门-以80%以上的相对丰度主导着群落。值得注意的是,所有浓缩的终点主要是黄杆菌,它是栖息在藻类表面的已知岩藻降解物的近亲。根据基因含量,MAG被分为三个生态协会:(1)‘降解者’,它们的基因组中含有岩藻糖苷酶和硫酸酶,并引发多糖分解;(2)‘开拓者’,缺乏这些酶,但拥有岩藻糖分解代谢基因,使它们能够与降解者竞争释放的岩藻糖;以及(3)‘清道夫’,不包含这两类酶,而是依赖代谢副产物进行生长(图1B)。
从这些丰富的内容中,研究人员建立了一个反映该群落分类和功能多样性的菌株集合(图1B)。共分离到5株开发菌、16株清道夫菌和7株降解菌,分别为V25(黄杆菌)、V69(玫瑰杆菌)、G88(假科氏杆菌)和4株黄杆菌(F12、F40、F56和F94)。此外,还包括了以前鉴定过的降解菌Lentimonas sp.CC4为菌株V43。通过确认降解者生长在岩藻多糖上,剥削者生长在岩藻多糖上(但不是岩藻多糖),以及清道夫无法利用这两种底物,对分离株分类进行了实验验证。虽然之前没有描述几种降解物,但研究发现,特别是V69和V4共同出现在许多与大型藻类相关的沿海生境中,突出了该菌株收集的生态相关性。总而言之,这29个菌株为剖析微生物群落中岩藻多糖的降解机制提供了基础。
对分离的降解菌进行的基因组分析揭示了出人意料的大量和多样化的岩藻多糖降解酶。研究人员确定了34个与岩藻多糖降解相关的基因组多糖利用位点(Puls),每个基因组编码一种不同的酶组合。针对硫酸盐和岩藻糖键的特征酶家族与另外44个酶家族共定位,其中包括10个预测作用于稀有糖单体的家族。特征的多糖结合和转运对SusC/D只在黄杆菌中发现。个体降解者编码13-127种不同的酶,定义为60%的氨基酸同一性阈值。菌株之间的谱系平均只有9%的重叠,在所有浓缩培养基因组中产生547种独特的酶。值得注意的是,菌株G88的所有酶都编码在一个112kb的质粒上,而菌株F56含有一个623kb的基因组岛,其中包含5个Puls。这些观察结果与富含大碳水化合物活性酶(CAZyme)的基因簇的横向获得一致。综上所述,这些发现表明,酶谱系是由基因流动性和从巨大的环境池中进行的部分采样形成的,最终形成了高度多样化的岩藻多糖降解酶格局。
尽管在基因组中发现了独特的酶系,但岩藻糖和稀有糖降解物之间出现了明显的功能差异。与总酶数无关,针对硫酸盐和岩藻糖键的酶在总岩藻糖苷酶谱中的比例变化很大-从F40的不到30%到G88的90%以上-表明切割岩藻糖键或其他单体键的基因组专化程度不同。此外,岩藻糖专性菌V25、V4和G88缺乏葡萄糖醛酸酶,并且编码的酶很少,是切割稀有糖单体侧链所需的(图1C)。相反,稀有糖专性菌F12、F40和F94含有较少的岩藻糖苷酶和硫酸酯酶。菌株F56和V69似乎是通才,拥有这两个功能类的酶,尽管V69缺乏来自GH29和GH95家族的外切作用岩藻糖苷酶。这些模式表明,不同的降解者对岩藻多糖单体有不同的偏好。
2. 互补单体降解
研究人员使用目标液色谱质谱(LC-MS)分析单体水平上的岩藻多糖降解,验证了对酶专化的基因组预测。通过酸解培养上清液释放结合在岩藻多糖中的单体,并使用建立的衍生化方法和优化的3.5min LC-MS方法进行定量。对所有八种降解物的时间分辨测量表明,单体消耗与生长密切相关,一旦培养进入稳定期,单体消耗就会饱和。在指数增长期间,还观察到游离单糖的瞬时积累,最显著的是岩藻糖,在V4中达到150微米,正如之前报道的。这表明胞外岩藻多糖的水解释放单糖的速度暂时超过了它们的摄取速度。随后,将岩藻多糖的降解量化为生长前后岩藻多糖结合单体的变化(图1D)。这种方法有效地捕捉了多糖酶裂解和微生物吸收释放的单体的综合影响-称之为单体降解过程。结果证实,只有降解物对岩藻多糖的周转有很大的贡献。为了评估代谢的专一性,研究人员确定了每个降解物的单体偏好,即从岩藻糖中提取的消耗碳的比例。这一指标与针对硫酸盐和岩藻糖键的酶的基因组比例与岩藻多糖总谱系的比例密切相关(r=0.75P<;0.001;图1E)。这证实了V69和F56是通才,而V4、V25和G88是岩藻糖专性菌,F12、F40和F94是稀有糖专性菌。
没有一种降解剂能够完全分解任何特定的单体类型。岩藻糖专性菌V4和V25对岩藻糖的降解率分别为87%和71%(图1F),但对半乳糖和木糖的活性有限,不能降解甘露糖或葡萄糖醛酸。相比之下,F12、F40、F56和V69能有效地消耗甘露糖或葡萄糖醛酸,但对岩藻糖的降解率较低。这种代谢专化性导致了有限的总降解率,即使在最强的降解菌V4、V25和V69中也是如此,它们分别达到了69%、59%和53%-大大低于在增菌培养中观察到的~90%的降解率。值得注意的是,更大的酶工具包并不一定能缓解这一瓶颈(图1G)。例如,尽管F56编码了>;100酶,但总降解率可以忽略不计,而G88只有13种酶,降解率达到23%。这种解偶联表明,获得互补底物组分--而不是酶计数--限制了岩藻多糖的降解,因此完全分解出现在代谢互补降解物之间的相互作用中。
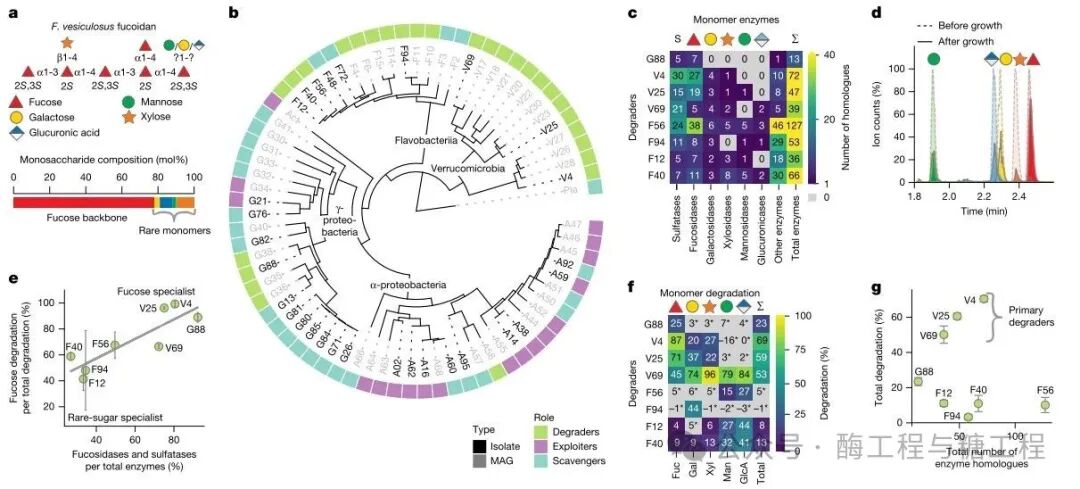
图1. 群落中的岩藻多糖降解者通过互补单体降解来专门化。A,泡囊镰刀菌岩藻多糖的主要重复单元的示意图结构和相应的单糖组成,如条形图所示。单糖的描述遵循多糖的符号命名法;糖苷键表示为正文,问号表示甘露糖、半乳糖和葡萄糖醛酸的未分解键。以岩藻多糖为唯一碳源的海洋细菌系统发育树。外环表示推测的代谢作用;名称用颜色表示,以区分分离株和后基因组组装的基因组。C,分离降解物中岩藻多糖相关酶的数量。根据针对相似岩藻糖链的推测活性将酶分组:硫酸酯酶(S1_15、S1_16、S1_17、S1_22和S1_25)、岩藻糖苷酶(GH29、GH95、GH107、GH141和GH168)、半乳糖苷酶(GH36、GH97和GH2)、木糖苷酶(GH39、GH120、GH3、GH30和GH31)、甘露糖苷酶(GH92)和葡萄糖苷酸酶(GH115)。‘其他酶’表示与岩藻多糖相关的具有未分解活性的CAZyme。Σ表示每个基因组中岩藻多糖相关酶的总数。数值表示同源基因计数,灰色单元格表示零计数,色条上限为40。对V69在岩藻多糖胶上生长前(点)和生长后(固体)的酸解培养上清液进行目标LC-MS色谱分析,以推断单体降解。峰由多个反应监测和保留时间确定的单体着色。为了可视化,单体的离子计数被归一化到生长前的样品。E.以硫酸盐和岩藻糖为靶标的酶占总酶的比例与每总降解物中岩藻糖的比例之间的相关性。点和误差条显示平均值±S.D.三个生物复制品中。F,热图显示从三个生物重复获得的平均单体降解率;灰色表示与对照相比没有显著变化。G,降解者中岩藻多糖降解酶的数量与岩藻多糖总降解量的比较。点和误差条显示平均值±S.D.三个生物复制品中。
3. 配对共培养中的协同效应
为了评估微生物相互作用对岩藻多糖降解的影响,研究人员测量了主要降解菌V4、V25和V69与29株菌株单独共培养时的生长产量和总降解率的倍数变化,并将结果与单一培养对照进行比较(图2A)。在接受测试的87对共培养物中,33对表现出与基于基因组的行会分类的预测大体一致的显著变化:8对具有清道夫的共培养对在不影响降解的情况下增加了生物量,支持它们在回收与降解途径没有直接联系的副产品方面的作用。相反,七对预测的剥削者既减少了生长,也减少了岩藻多糖的降解。令人惊讶的是,16种降解者-降解者共培养物显示出积极的相互作用,其特征是生物量和降解率都有所增加,以及更高的增长率。唯一的例外是G88,它在与V69配对时会增加降级,但在与V4和V25配对时会充当剥削者。在降解结果发生变化的共培养子集上,使用由菌株特异性定量聚合酶链式反应(qPCR)确定的绝对物种丰度来分类相互作用类型(图2B)。开采者以牺牲初级降解者为代价增加了生物量,这与释放的岩藻糖的机会主义消费是一致的。降解者与降解者的相互作用与总降解量和生物量的增加主要是共生的,但也包括两全其美和竞争的情况;只有V69-G88对是互惠互利的。这些结果区分了物种水平上的生态相互作用类型和功能水平上的正相互作用,表明增强群落功能并不一定需要两个菌株的互惠互利。
观察到的降解者之间的积极相互作用不能仅仅用资源划分来解释,这表明在功能层面上出现了协同效应。为了量化这一点,研究人员定义了一个协同得分,表示为σ(i,j),通过计算观察到的总降解与假设菌株之间除了单纯的资源分配之外没有相互作用的零假设之间的差异(图2C)。V25和F56之间的协同作用最强,达到18%,总降解率达到79%。总体降解水平最高的是V25/V69对(82%)和V4/V69对(93%),每对都表现出约8%的协同贡献。总体而言,在计算的协同效应σ(i,j)和配对菌株之间单体降解曲线的不同之间发现了强烈的负相关(r=-0.79,P<;0.001;图2D),表明互补的代谢能力以非相加的方式放大了降解。此外,与总酶的关系(r=0.53,P=0.02)。总而言之,这些结果表明,当酶和代谢能力最大化时,岩藻糖和稀有糖专性菌的组合会产生协同作用。
4. 协同效应的机理
为了确定降解物之间的相互作用是否纯粹是资源介导的,还是涉及额外的代谢交换,我们使用从三个固定相Verrucomi-crobiota培养获得的无细胞、纯化的残留岩藻多糖(大于1 kDa)来测量降解(图2e)。这些残留的岩藻多糖含有生产菌株在酶作用下无法获得的碳,即使作为新的碳源供应也是如此(图2F)。当提供给其他降解菌作为唯一碳源时,LC-MS测量表明,除F94外,所有降解菌至少利用了三种残留底物中的一种,F56的残留物降解率是未经处理的岩藻多糖的三倍。这一额外的降解定量地与在相应的共培养中观察到的增强性能相匹配(R2=0.9,P<;0.001;图2G),表明降解者之间的协同作用不需要细胞间的直接接触或小分子的交叉喂养,而是来自互补的酶活性,以释放否则无法获得的碳。
为了测试酶的互补性是否产生协同作用,研究人员纯化并鉴定了九种预测的针对稀有糖单体的外源作用酶。这些酶被归入CAZyme家族GH39、GH36、GH130、GH115、GH92和GH97,因为它们在岩藻多糖降解中的未知作用以及它们在降解物中的独特分布。用PNP标记的底物类似物、天然岩藻多糖和来自三个Verrucomi-crobiota降解菌的残留岩藻多糖的分析证实了六种酶的预期底物特异性,包括α-半乳糖苷酶(V25|GH36,V25|GH97_A,V69|GH97_A,V69|GH97_B),一个α-甘露糖苷酶(F56|GH92_E)和一个β-木糖苷酶(F56|GH39),而三个酶没有检测到活性。动力学分析得出F56|GH39的米氏常数(Km)为15.79 mM,V25|GH36的米氏常数为1.25 mM,与报道的一致。值得注意的是,几种活性酶在不同的岩藻多糖PULs中编码,为这些基因座提供功能支持。从岩藻多糖底物中释放的单体很低(初始池的0.01-7.48%),这表明只有有限的一小部分连接可以被单个酶结合(图2H)。相比之下,大多数酶在残留岩藻多糖上表现出明显更高的活性,这表明先前的酶处理暴露了原本无法接触的键,F56|GH92_E和V25|GH97_A的活性增加了10倍。此外,GH97同系物之间不同的活性谱进一步表明底物在结构上不同的侧链上分配。综上所述,这些结果表明,互补水解酶酶谱扩大了底物可及性,并推动了共培养中的协同降解。
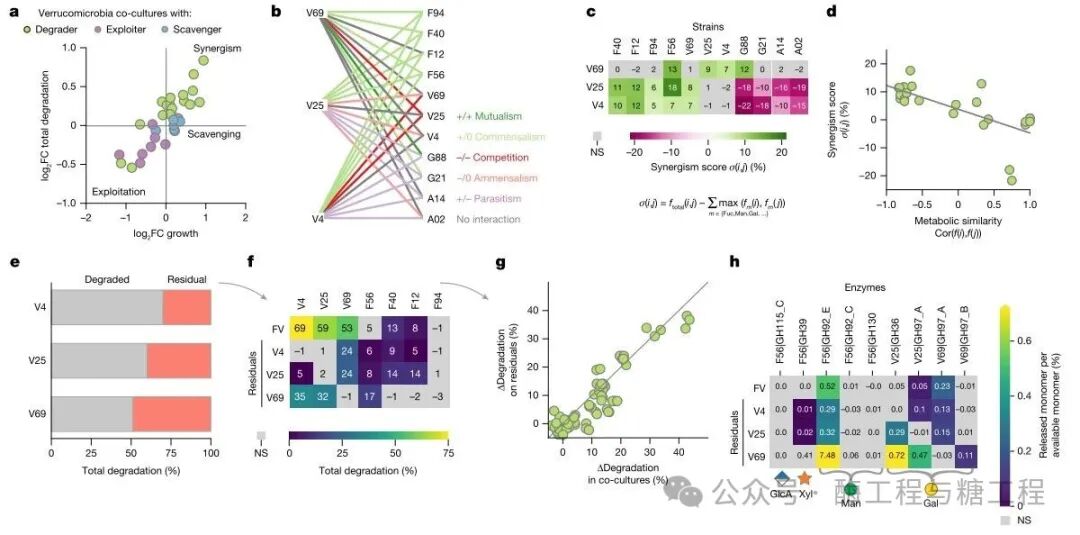
图2. 成对共培养中互补降解物之间的协同作用。与相应的Verrucomicrobiota单一培养相比,87株Verrucomicrobiota菌株与其他群落成员成对共培养的生长产量和总岩藻多糖降解率的A,log2转换倍数变化(FC)。只显示了显著的变化;圆点根据配对菌株的新陈代谢作用进行了颜色编码。B,通过菌株特异性定量聚合酶链式反应测量,从共培养中相对于单一培养中菌株丰度的变化推断出的成对相互作用网络。节点表示应变和边交互类型。C,与其他群落成员配对的微生物群菌株的协同得分(σ(i,j))。分数量化了独立底物利用的零模型的偏差。灰色表示与零预期相比没有显著变化(NS)。D,菌株对的协同得分与代谢相似性之间的关系,计算为单培养中z得分归一化单体降解曲线之间的成对相关性。E,三个初级降解菌对岩藻多糖的降解,以及用于交叉进料试验的相应剩余底物。F,次级降解者对初级残留岩藻多糖的额外降解,按比例扩大到初始岩藻多糖池(残留物分数×由次级降解者降解的分数)。灰色表示与对照组相比没有显著的(NS)变化。A-f中的数据表示3个生物复制的平均值(n=3);复制级数据和准确的P值在源数据文件中提供。G,混合培养中的额外降解与纯化的残留岩藻多糖的降解之间的关系。共培养值计算为共培养中的总降解量减去主要降解物单独的降解量。残留值表示二次降解剂对纯化的残留岩藻多糖的降解。圆点显示的是个体的生物复制。H,通过纯化的酶从岩藻多糖和岩藻多糖衍生的残留底物中释放单糖,归一化为底物中存在的相应单糖的总量。单糖符号和文字指示每种酶释放的单糖的类型。数值表示三个生物重复数(n=3)的平均值,灰色表示没有显著的(NS)释放。
5. 协同效应的定量预测
为了探究协同效应是否超越配对,研究人员测量了7个一致降解者的所有127个组合的降解,不包括G88。总退化量随着群落丰富度的增加而增加,在5个成员群落F40,F56,V69,F94和V4中从4 %到最高97.1 %不等(图3a )。在F56和F94之间观察到了一个显著的协同作用的例子,它们在单一培养中显示出最小的降解,但当结合在一起时达到50%的降解。
结果显示高度的功能冗余,在多个群落配置中实现了近乎完全的降级。一些配置依赖于几个高性能菌株(例如,V69与V25配对),而另一些配置依赖于单独较弱的降解菌的协同组合。例如,四个黄杆菌菌株虽然单独无效,但共同接近V69的降解性能。这种功能冗余意味着,多样化的群落可以作为缓冲,抵御与颗粒相关的海洋微生物所特有的物种组成的随机变化。值得注意的是,即使在接近完全退化的情况下,80%的交互作用仍然是协同作用,超出了简单的资源划分的预期,而负交互作用是罕见和微弱的(图3B)。这些发现表明,一个平稳的结构-功能景观,具有最小的高阶效应和高度的群落功能可预测性。
为了进一步评估复杂群落中退化的可预测性,研究人员开发了一个将群落组成与退化结果联系起来的机械模型(图3C)。该模型的灵感来自观察到的岩藻糖和稀有糖专性菌之间的资源分配,并将岩藻多糖表示为两个单体池(岩藻糖和稀有糖),其中菌株的特征是它们降解每种类型的能力。鉴于退化往往在较富裕的群落中趋于饱和,研究人员假设,通过Hill函数捕获的单个菌株的能力的非线性组合可以预测群落水平的退化。模型参数--特定菌株的降解潜力和希尔系数--是从一员、二员和三员群落的数据中推断出来的。这个简单的框架被证明是非常有效的,准确地预测了所有127个群落组合的退化(R2=0.96P<;0.001;图3C),包括F56和其他降解者之间的紧急相互作用。这些结果表明,尽管岩藻多糖的结构复杂,涉及的酶途径也很多样化,但从单个菌株对岩藻多糖和稀有糖单体利用的协同贡献中,可以可靠地预测群落水平的降解。
考虑到单体的组成、结构和降解岩藻多糖的途径在褐藻物种之间有很大的不同,研究人员验证了结果在八种不同类型的岩藻多糖。使用Full来量化降级单糖分析用于分离共提取的多糖和七个群落的环境退化。大多数底物都是高纯度的,测得的单糖中90%以上可归因于岩藻多糖,岩藻糖占其中的63-96%(图3D)。然而,两种制剂(D.potatorum和F.serratus)含有高血糖水平(分别为45%和73%),可能来自共同提取的层粘连蛋白,而层粘连蛋白在群落中几乎完全耗尽,显示出不稳定的葡聚糖的快速消耗。相比之下,岩藻多糖的降解强烈依赖于群落组成:较简单的群落表现出有限的降解,这与不完全酶系施加的限制一致。同样与我们之前的观察一致,只包含稀有糖专性菌F12、F40和F94的群落在富含稀有糖单体的底物上实现了更高的降解率。值得注意的是,在没有任何改装的情况下,研究人员的预测模型推广了对于这些化学上不同的岩藻多糖(R2=0.9,P<;0.001;图3e)。利用白曲霉对岩藻多糖的训练参数,建立了该模型通过核算准确预测所有基质的降解情况仅用于岩藻糖和稀有糖单体的化学计量。这表明,尽管总的单体组成和多糖结构不同,但降解物的代谢能力和它们的协同作用在不同的底物上保持保守。
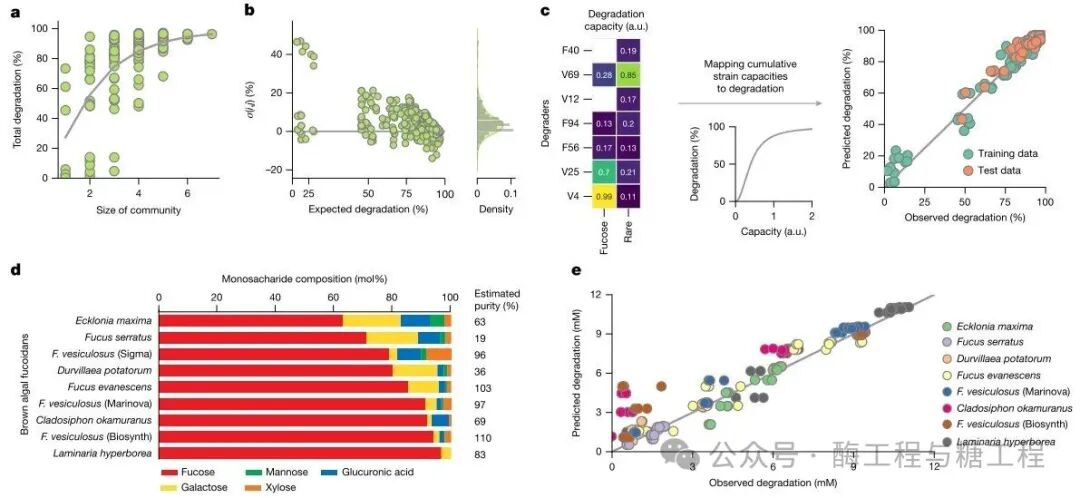
图3. 功能互补使不同岩藻多糖结构之间能够实现可预测的降解协同作用。A,最多7种降解剂的所有127种可能组合中的岩藻多糖总降解率。数据点显示了三个生物重复的平均值;灰色线条表示每个群落规模的平均退化。B,在假设没有相互作用的情况下,127个群落的协同效应得分与预期退化相比。左图,预期降级与协同得分的散点图。右图:协同效应得分分布密度图。显示了来自三个生物复制的所有单独数据点。基于菌株特定底物偏好的群落退化预测模型。左图是7个菌株对岩藻糖和稀有糖单体降解能力的推测热图。中间的非线性Hill函数(n=2.1,Km=0.4)将累积应变能力映射到预测退化。对127个群落的预测和观察到的退化;圆点通过训练或测试集着色,并显示三个生物重复的平均值。A.U.A,任意单位。D、九种岩藻多糖的单糖组成和岩藻多糖纯度估算。条形显示岩藻多糖衍生的单糖的相对丰度。估算的岩藻多糖含量提供了岩藻多糖衍生物质在总可水解性碳水化合物池中所占比例的近似值。E,观察到与预测的七个选定群落的九种岩藻多糖底物的降解情况。根据底物特性对点进行着色,并显示来自三个生物复制的所有数据点。
6. 协同作用的全球宏基因组学证据
到目前为止,已经看到岩藻多糖的降解是由降解物之间的协同作用控制的,根源于它们酶系的互补性。为了评估这些相互作用是否限制了岩藻多糖在全球范围内的循环,我们利用宏基因组数据来量化被归类为降解物的生物的丰度和共生模式(图4a-c)。在Motus数据库中的12,347个海洋宏基因组中,确定了1,632个假定的降解者物种,编码5到175个岩藻多糖酶基因。降解物的丰度和流行率呈高度右倾分布(相对丰度中值:1.6%,最高:33%),与以前关于Lentimonas sp.的报告一致。关键的是,多物种组合几乎是普遍的:94%的样本含有多种降解物物种(中位数:每个样本15个物种)。这种在不同海洋生境中普遍存在的共生降解物表明,在培养中发现的协同作用可能会限制全球范围内的岩藻多糖流动。
为了量化共生降解物之间协同作用的潜力,重点研究了528种确定了岩藻多糖靶向PULs的物种。这些PULS的酶组成的变化概括了研究分离株中观察到的功能专门化,包括富含针对硫酸盐和岩藻糖键的酶或其他可能作用于稀有糖单体的酶(图4D)。利用这些差异,研究人员基于降解物与高容量(上四分之一)和低容量(下四分之一)岩藻糖靶向脉冲的共存,保守地估计了海洋样本之间的协同信号。这一分析确定了806个样本包含两个功能极端,因此具有潜在的协同作用(图4e)。综上所述,这些发现表明,功能上专门的和互补的岩藻多糖降解物经常在海洋中共存,支持协同作用作为降解复杂海洋岩藻多糖的生态相关战略。
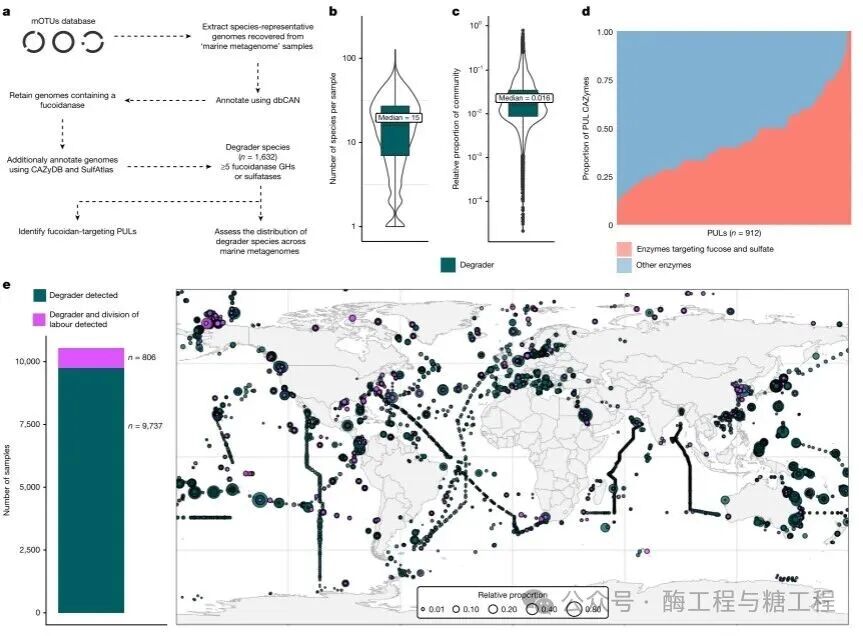
图4. 海洋微生物群落中岩藻多糖协同降解的潜力。A,用于确定岩藻多糖降解物种及其跨海洋后基因组功能图谱的分析工作流程概述。GH,糖苷水解酶。B,c,降解物物种数量的分布(B)及其在每个样本群落中的相对比例(C)(来自10,543个宏基因组样本),表明多个降解物通常在单个群落内共存,代表一致但通常较低的丰度比例。框图显示了分布的第25个百分位数、中位数和第75个百分位数,胡须代表最小值和最大值。相对比例被定义为每个群落中归因于降解者的基因组比例,通过单拷贝标记基因覆盖率确定。D,岩藻多糖靶向PULS的酶组成,说明了靶向PULS的硫化岩藻糖和稀有糖单体的连续体。E,对,含有降解物物种(青绿色)的超基因组样本(n=10,543)和具有互补功能图谱的共生降解物样本(紫色)的全球分布。左边的条形图总结了检测到降解物的样品数量和观察到协同降解潜力的子集。

03
结论
研究结果表明,互补降解物之间的正向相互作用是海洋微生物群落完全分解岩藻多糖的关键。这强调,它的退化从根本上说是集体努力。尽管是一类特别复杂和多变的多糖--有几十个糖苷键和一个广阔的酶空间--但事实证明,岩藻多糖在群落一级的降解是非常可预测的。这一悖论通过降解菌之间的协同作用得到解决,在降解菌之间,单个菌株一致地专攻富含岩藻糖的主干或稀有糖的侧链,在不同的岩藻多糖结构上显示出保守的代谢作用。这使得能够定量绘制群落组成与退化结果的地图,并强调了褐藻保护性细胞外基质和微生物降解物之间的共同进化军备竞赛在单体水平上展开。
降解协同作用不一定来自相互作用,而是依赖于酶系之间的互补性。唯一的例外是互惠互利的V69-G88对,这表明真正的合作分工虽然很少,但可以在这些系统中发生。进化和生态压力似乎推动了互补酶在有机体中的分配。几个互不相容的假设似乎是合理的。一种可能性涉及岩藻糖和其他己糖之间的代谢权衡:虽然侧链糖通常进入上层糖酵解,但岩藻糖在下层糖酵解水平进入新陈代谢,需要糖异生通量来产生上游中间产物。这种错配可能有利于以岩藻糖主链或侧链为目标的专性菌的进化,避免在中心碳代谢中潜在的浪费循环。另一个因素可能是维持和调节广泛的酶制剂的代谢成本。完全自给自足的降解者必须协调数百个基因的表达,其中许多基因是处理低丰度单体所需的,这使得这种策略在能量上效率低下。最后,通过基因漂移等中性过程不断丢失基因,以及共存的降解者弥补缺失功能的能力,表明完全降解者可能在进化上不稳定。相比之下,基因缺失可能会导致互补类型的反复出现,这些类型共同实现完全降解。
研究人员的发现对微生物生态学和生物技术都有影响。首先,他们强调了通过工程设计单个菌株来降解岩藻多糖等复杂化学底物的挑战,在这些底物中,确定精确的酶功能被证明是困难的。相比之下,利用进化前的代谢互补来利用微生物群落,为生物质转化提供了一种强大且可扩展的替代方案。因此,我们的工作建立了一个概念和实践框架来处理日益重要的褐藻生物量,并可能扩展到其他具有类似结构的多糖,如木聚糖。其次,从生态学的角度来看,我们的实验和元基因组分析表明,岩藻多糖的降解通常是由共生的降解物与互补的酶谱组合而成。这种对互补伙伴集合的依赖可能有助于解释微生物多样性如何塑造岩藻多糖周转,并影响其持久性和对海洋碳储存的贡献。研究突出了微生物多样性、多糖周转和全球生物地球化学循环之间的一种未被认识到的联系。鉴于微生物群落对全球海洋变暖的反应,群落结构的变化可能最终影响海洋的碳固存功能能力。
DOI: https://doi.org/10.1038/s41586-026-10980-z
END
前期回顾
来源 微信公众号 · 查看原文
版权申明 本网站立足国家海洋药物和生物制品产业联盟,致力于打造海洋生物医药“产学研用”一站式、综合性资讯共享服务平台,促进我国海洋药物和功能制品“资源链、科技链、产业链、应用链”协同创新、深度融合发展。本文转载自原文来源。版权归原作者及原来出处所有,部分文章未能联系到原作者,在此深表歉意。如涉及版权问题,请留言联系我们协商处理(邮箱:czhang@tio.org.cn),侵权内容将即刻删除。
免责声明 本文仅代表作者个人观点,与本平台立场无关。本站不对内容真实性、完整性、时效性作保证,仅供参考,请读者自行核实。